Меню


 Все темы
Почему беременная мышь ест много жирного и сладкого?
Известно, что при беременности пищевые привычки могут сильно меняться, однако причины сильной тяги к тем или иным продуктам оставались неясны. Авторы статьи в Nature Neuroscience провели эксперименты на беременных самках мышей и выявили «виновника» на нейробиологическом уровне. Тяга беременных мышей к жирной, высокобелковой или сладкой пище была связана с пониженной активностью серотониновых нейронов в дорсальных ядрах шва, которые ограничивают пищевое поведение. При беременности в этой популяции нейронов возрастает экспрессия калиевого канала SK3, что приводит к снижению их возбудимости. Селективный нокаут SK3 подавлял изменения в пищевых привычках беременных мышей и, что важно, препятствовал набору избыточного веса при длительном питании высокожировым кормом.
Сильная тяга к определенным продуктам во время беременности — распространенное явление, которое может сказываться на здоровье как матери, так и плода. Но почему такая тяга вообще возникает? Ответу на этот вопрос посвящено исследование, опубликованное в Nature Neuroscience. Его авторы показали на мышах, что ключевую роль играют серотонинергические нейроны дорсальных ядер шва — их активность снижается во время беременности, и это влияет на пищевые предпочтения.
В эксперимент включили самок мышей на разных сроках беременности (7-й и 14-й дни), на 5-й, 28-й и 56-й день после родов, а также нерожавших самок в качестве контроля. Мышам из каждой группы предлагали выбор между стандартным кормом и пищей с высоким содержанием белка, либо жира, либо сахарозы. Потребление каждого из вариантов отслеживали в течение 2,5 часов, днем, когда животные были сыты. Самки на 14-м дне беременности демонстрировали повышенную тягу к высокобелковому, высокожировому или сладкому корму по сравнению с нерожавшими самками, как и мыши на пятые сутки после родов (во время лактации). Пищевое поведение мышей в остальных группах не отличалось от контроля.
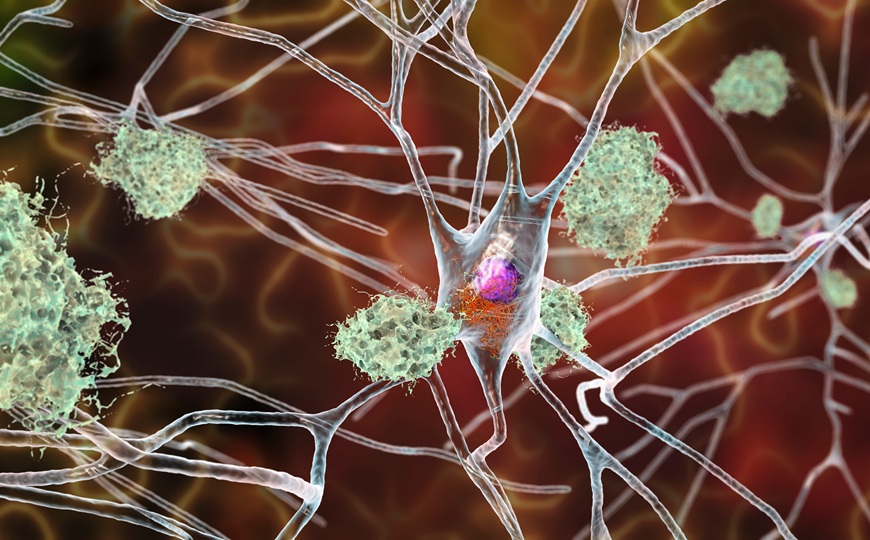
Ключевую роль в регуляции пищевого поведения играет серотонинергическая система головного мозга. Серотонин синтезируется в основном нейронами дорсальных ядер шва в среднем мозге (5-HT-нейронами DRN), которые посылают проекции ко многим участкам мозга. Ученые измерили активность этой и других популяций нейронов, связанных с пищевым поведением, в том числе нейронах аркуатного ядра гипоталамуса, экспрессирующих агути-подобный пептид (AgRP), проопиомеланокортин (POMC) или везикулярный транспортер ГАМК (Vgat). Различия наблюдались только в 5-HT-нейронах DRN — их активность была снижена у беременных самок. На 14-й и 18-й дни беременности, а также на пятый день после родов в них реже происходила спонтанная активация, а мембрана была гиперполяризована. На более раннем (7 дней) сроке беременности таких изменений еще не наблюдалось. Иммуногистохимическое исследование показало, что при этом повышался уровень фосфорилированной пируватдегидрогеназы — маркера сниженной активности нейронов.
Чтобы установить, каким образом при беременности подавляется активность 5-HT-нейронов DRN, ученые провели секвенирование РНК единичных клеток. Они выявили повышенную экспрессию кальцийзависимых калиевых каналов SK3, активность которых приводит к оттоку калия из клетки и обеспечивает гиперполяризацию мембраны.
Селективный нокаут SK3 в 5-HT-нейронах DRN авторы провели с помощью тамоксифен-индуцибельной Cre-рекомбиназы. Делеция SK3 после введения 4-гидрокситамоксифена восстанавливала активность этих нейронов, а тяга к корму с повышенным содержанием жиров, белков или сахара при этом снижалась. Напротив, оверэкспрессия этого калиевого канала в серотонинергических нейронах DRN нерожавших самок провоцировала у них изменения пищевых предпочтений, характерные для беременных мышей. Что важно, селективный нокаут SK3 предотвращал набор избыточной массы при длительной высокожировой диете.
Затем исследователи картировали нейронные связи, вовлеченные в этот механизм, с помощью экспрессии в 5-HT-нейронах DRN Cre-зависимого каналородопсина 2 (ChR2), слитого с желтым флуоресцентным белком (YFP). Распределение YFP по отросткам нейронов показало, что они посылают моносинаптические проекции в вентральную область покрышки (VTA). Оптогенетическое ингибирование 5-HT-нейронов DRN или их мишеней в VTA приводило к тому, что у нерожавших самок возникала тяга к пище с высоким содержанием белка, жира или сахара. Напротив, стимуляция этих популяций клеток подавляла подобное поведение у беременных мышей.
Таким образом, ключевую роль в изменениях пищевого поведения беременных мышей играет сниженная возбудимость серотониновых нейронов в дорсальных ядрах шва. У нерожавших самок уровень экспрессии SK3 низок, что поддерживает устойчивую активность этих нейронов и ограничивает тягу к высокобелковой, жирной или сладкой пище. При беременности активность этих нейронов снижается, и такое ограничение ослабевает.
Воздействие запахов жирной пищи на беременных мышей изменяет пищевое поведение их потомства
Источник
Zhao, Q., et al. Serotonin neurons in the dorsal raphe control food-craving-like behavior during pregnancy in mice. // Nat Neurosci (2026). DOI: 10.1038/s41593-026-02445-3
Вам будет интересно
 326
 0


 628
0